简介
这是一个跨学科的数学生态学项目。我从萤火虫的「攻击性拟态」现象切入,结合信号检测理论与终端投资假说,建立了个体决策和种群变化两层数学模型。模拟过程中,我又引入了「双逻辑斯蒂动机门控」,尝试解释真实雄性数量与野外展示强度为什么会在不同时间达到峰值。
I · 缘起
我一直对物种间的生态关系很感兴趣,尤其是不同生物之间的交流方式,以及这些交流如何影响整个群体的行为。最初我以为物种之间、个体之间的交流只有促进团结协作的作用——毕竟,大家沟通不就是为了把事情做好嘛。但在查找资料的过程中,我发现了一种与原先想法相反的现象:在萤火虫的世界里,交流竟然可以被用来欺骗和捕食。
在这里讨论的 Photinus 求偶过程中,雄性先发出求偶闪光,雌性接收到信号后,再用闪光做出回应。雄性看到雌性的回应信号,就会朝它所在的位置飞去,寻找交配机会。
而部分 Photuris 雌性萤火虫利用的正是这个过程:在 Photinus 雄性发出求偶信号后,它们会模仿 Photinus 雌性的回应闪光,让雄性误以为遇到了愿意交配的同类,飞来后却被捕食。于是我就想研究,这种欺骗为什么能奏效?我尝试建立数学模型,看看雄性如何判断这些信号,以及它们的选择会怎样影响整个繁殖季的数量变化。
这种利用模仿来获取猎物的行为,被称为攻击性拟态(Aggressive Mimicry),其他动物中也有类似的例子。在这个项目中,是Photuris versicolor 雌性使用信号欺骗的策略在对 Photinus consanguineus 雄性的捕食中展现了这种行为。但这个“欺骗”的技术,在捕食者和被捕食者之间达成了一种微妙的平衡。被捕食者没有被骗灭绝,也不能完全分别真假信号。那么Photinus consanguineus 雄性作为被捕食者到底是怎么决定,该不该回应某一次闪光的?
II · 理论
理解这个选择,可以借助信号检测理论(Signal Detection Theory)和演化生物学中的终端投资假说(Terminal Investment Hypothesis)。前者讨论如何在不确定的信息中做判断,后者帮助解释为什么同样的风险,在生命的不同阶段可能对应不同的选择。
1. 信号检测理论(Signal Detection Theory)
信号检测理论是心理学和统计学中的一种量化模型,用来描述观察者如何在有干扰的情况下识别目标。它把“有多容易区分”与“判断有多严格”分开讨论:
-
敏感度(): 表示两类信号有多容易区分。在常见的等方差正态模型中,它是两条分布的均值差除以共同标准差。 越大,越容易分辨。这里借用的是这一理论的判断思路,后续模型直接比较两类回应延迟的分布。
-
判断标准(): 表示做出判断的严格程度。同样的信息,采用不同标准,可能得到不同结果。
放到这个项目中,雄性对回应信号的判断有四种结果:
| 回应来源 | 判定为真雌性 | 判定为捕食者 |
|---|---|---|
| 真雌性 | 命中(Hit) | 漏报(Miss) |
| 捕食者 | 误报(False Alarm) | 正确拒绝(Correct Rejection) |
采取保守标准,可以减少把捕食者当作配偶的情况,但也会错过更多真实回应;采取宽松标准,则能保留更多交配机会,同时增加受骗风险。
在模型中,真雌性的回应时间有一定波动,捕食者的模仿也有波动,两类延迟分布存在重叠。因此,雄性无法仅凭一次回应的延迟完全辨别真假,选择的标准会随着交配机会和被捕食的代价发生变化。
2. 终端投资假说
终端投资假说讨论的是:当个体未来的繁殖机会减少时,它可能增加对当前繁殖的投入。衰老、疾病或环境压力都可能触发这种变化,具体反应取决于个体状态和环境。
这也给萤火虫的选择提供了一个解释角度。对于模型中被捕食的雄虫来说,它们主要依靠幼虫期积累的能量完成繁殖:繁殖季早期还有较多未来交配机会,死亡的代价较高,雄性可能更保守;繁殖季后期随着剩余机会减少,错过眼前交配机会的影响越来越大,它也可能更愿意承担风险。
这样一来,即使捕食者的模仿并不完美,也可能诱使雄性接近。我的模型要比较的,就是不同信号环境和生命阶段下,雄性承担风险的选择会发生什么变化。
III · 实战
我的模拟分成两个部分:静态模拟描述个体面对一次回应时的选择;动态模拟描述这些选择与羽化、死亡、捕食一起,如何影响一个繁殖季的种群变化。
静态模拟
静态模拟首先要回答一个概率问题:雄性发出求偶闪光后,如果在延迟 时收到回应,这个回应有多大可能来自同类雌性,而不是捕食者?这里用 表示单次回应的延迟,单位是秒;后面的 表示繁殖季时间,单位是天。
我参考了 Lloyd(1965、1966)对 Photinus 闪光通讯和 Photuris 攻击性拟态的真实观测记录,再据此设定参数,用正态分布近似两类回应。模型中,真雌性的平均延迟为 1.0 秒,标准差为 0.05 秒;捕食者的平均延迟为 1.1 秒,标准差为 0.20 秒,模仿的波动更大。这些数值是受文献约束的模型设定。
接着就可以使用贝叶斯公式。记 为“回应来自同类雌性”, 为“回应来自捕食者”, 为“观察到延迟落在 附近一小段时间内的回应”:
其中, 和 是先验概率:还没利用回应延迟时,信号来自真雌性或捕食者的背景概率,后文记为 和 。它们既与两类雌性的数量有关,也受每只雌性产生有效回应信号的频率影响。
表示已知回应来自真雌性时,出现这段延迟的概率, 同理。公式算出的 ,就是结合这次观察后,信号来自真雌性的后验概率。
计算时,我用 和 表示两类延迟的概率密度。它们描述回应时间有多集中在 附近;乘以一小段时间宽度,就近似得到回应落在这段时间内的概率。当区间不断缩小时,公式就转为概率密度形式,后文将得到的后验概率简记为 。
有了概率,就可以用期望收益描述雄性的选择:
这里 , 是一次成功交配的收益, 是错误接近捕食者的死亡代价。
我先设定两类信号的先验概率各为 0.5,交配收益 ,死亡代价 。代入延迟分布后,即使在最有利的延迟位置,真雌性的后验概率也只有约 0.82:
在这组参数下,没有出现值得接近的信号区间。也就是说无论如何雄性都不愿意做出回应?这显然不符合自然的实际情况。
后来我意识到,先验概率会随着繁殖季变化。模型采用先雄后雌的羽化顺序:季初真雌性少,捕食者信号所占比例高;季中真雌性集中出现,真实回应的先验概率随之上升。将它提高到 0.85、捕食者信号先验降到 0.15 后,模型中就出现了值得接近的区间。
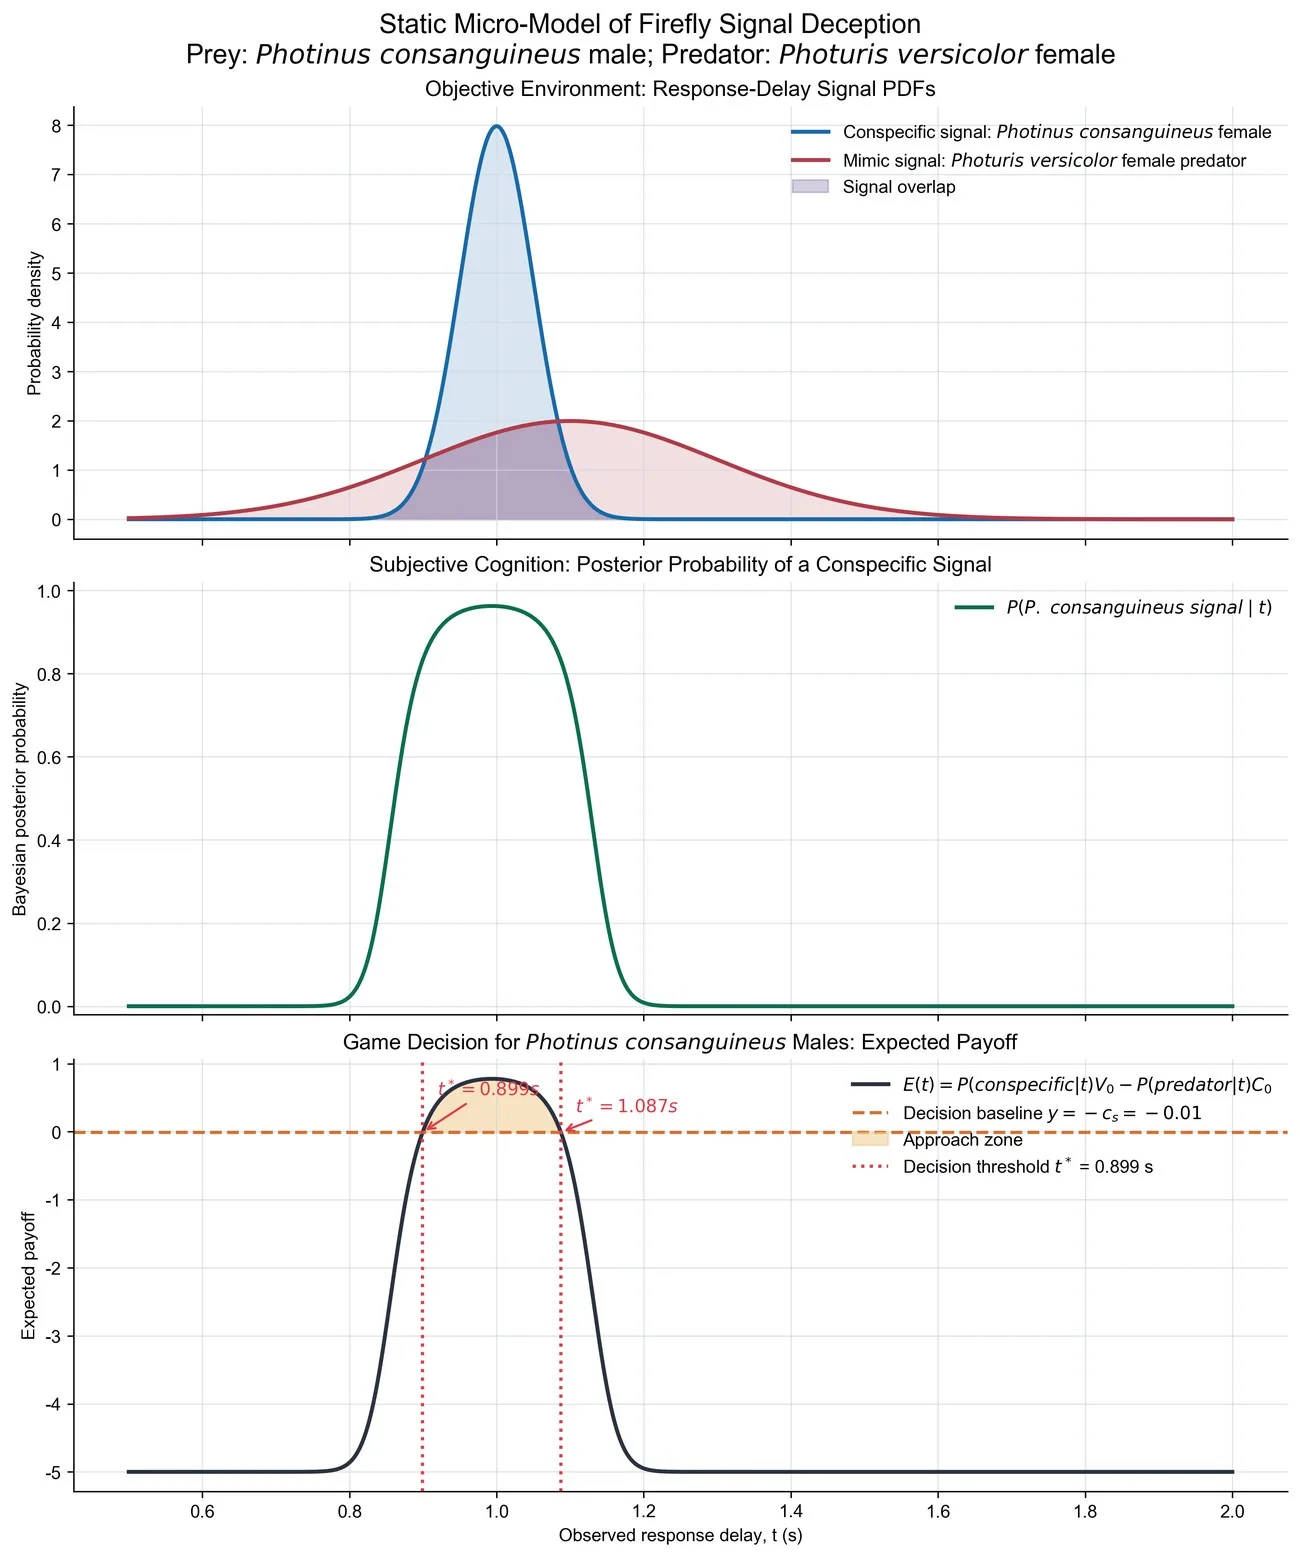
图注:这里展示的是真实回应先验为 0.85 的情景。三个图的横轴都是回应延迟,图中的 对应正文的 。上图展示真雌性(蓝线)与捕食者(红线)的延迟分布;中图展示信号来自真雌性的后验概率;下图展示接近信号的期望收益。黄色区域高于继续搜索的橙色虚线基线,两条红色竖虚线标出接近区间的边界。
动态模拟
有了静态决策模型后,我把它放进一个繁殖季的时间轴里,用一组常微分方程描述猎物雄性 、猎物雌性 和捕食者 的数量变化:
这组方程表示的,就是新增羽化量减去自然死亡和捕食损失。模型只追踪这一个繁殖季,捕食者在季内没有新增个体。几个关键部分是:
-
先雄后雌的羽化: 和 是按正态曲线设定的每日新增羽化量。雄性羽化峰值早于雌性,季初真实回应的先验概率因此较低。
-
衰老与终端投资: 是雄性的自然死亡率,在基础值上叠加了季末上升的衰老项; 和 分别是雌性与捕食者的固定自然死亡率。另外,我让死亡代价 随剩余繁殖机会减少而下降,用它体现终端投资带来的风险容忍变化。
-
Holling II 型捕食饱和:捕食者需要时间处理猎物,不能无限加快进食。因此,捕食速率 写为:
其中, 控制捕食者遇到并攻击猎物的效率, 是处理一只猎物所需的时间, 是易被捕食的雄性数量。随着猎物增多,单只捕食者的摄食率最多趋近于 。
数值计算的每一步,系统都会根据当前雌性和捕食者数量更新先验概率,并按季节阶段更新交配收益与死亡代价。再用静态模型算出雄性接受欺诈信号的平均概率 ,乘以雄性总数,得到 。把它代入捕食项后,就能继续计算种群变化;将捕食速率在一天内累积,得到当天的捕食量。
在这组参数下,模拟呈现出这样的变化:
| 阶段 | 发生了什么 | 为什么 |
|---|---|---|
| 季初 | 雄性逐渐增多,但很少接近雌性式回应 | 真雌性少,死亡代价高;雄性仍可巡飞、发出求偶闪光 |
| 季中 | 愿意接近回应的雄性比例上升 | 真雌性增多,真实回应的先验概率上升 |
| 季末 | 雄性更愿意冒险,但绝对捕食量反而下降 | 雄性总量和捕食者数量减少,单只捕食者的摄食率也有上限 |
但将模拟的雄性数量与野外展示记录比较时,峰值时间仍有差距。这让我开始考虑这种模型预测数量与野外展示记录的差异,究竟会由什么机制导致?
IV · 创新
我又去查了一些资料,发现野外观测到的数量与真实数量有差距,是一个普遍存在的问题。距离、角度和植被遮挡会影响我们能看到多少虫子;虫子本身的活跃程度,也会影响它们有多容易被看到。
因此,我把影响分成两部分:一部分是观测条件,另一部分是虫子是否在积极展示。它们可能仍在飞行,却很少发光,也可能处于频繁闪光的求偶状态。我把后一部分叫作“活动狂热因子”,用来描述展示活跃度。这里暂时把观测条件的影响视为相对稳定,重点处理活跃度随季节的变化。
这个因子应该是什么形状?我想到之前见过的 HH 模型(Hodgkin-Huxley 模型):钠通道的激活与失活门控共同控制电流变化。这启发我用一个启动过程和一个关闭过程,描述雄性展示的增强与衰退。
在植被遥感领域,Beck 等(2006)也用过双逻辑斯蒂曲线,描述植被绿度的季节变化。我尝试借用类似的形式:一个递增函数近似表示交配机会增加后的展示增强,另一个递减函数近似表示能量消耗、衰老等带来的展示衰减。两者结合,就能得到先上升、后下降的曲线。
于是,我构建了一个“双逻辑斯蒂动机门控”模型,将雄性数量转换为可见展示强度:
其中:
-
是种群方程算出的雄性数量, 是模型预测的相对展示强度,方括号中的部分是展示活跃度的倍率。
-
是基础展示倍率, 控制额外展示的增幅。
-
是递增的逻辑斯蒂函数,近似描述交配机会增加时,求偶展示的增强; 是递减函数,近似描述季末展示的衰减。
加入这一层并调整参数后,模型的展示曲线与野外参考资料中的变化趋势、最高展示时间更接近了。模型中,雄性数量较早达到峰值,之后虽然数量减少,展示活跃度却仍在上升,让展示强度的峰值晚了几天。
这里比较的是 Faust 与 Weston(2009)对同属 Photinus carolinus 的野外记录,以及根据物候节点重构的参考曲线。这种接近说明模型提供了一个可能的解释;真实数量和展示活跃度是否如此变化,还需要对研究对象同步观测来检验。
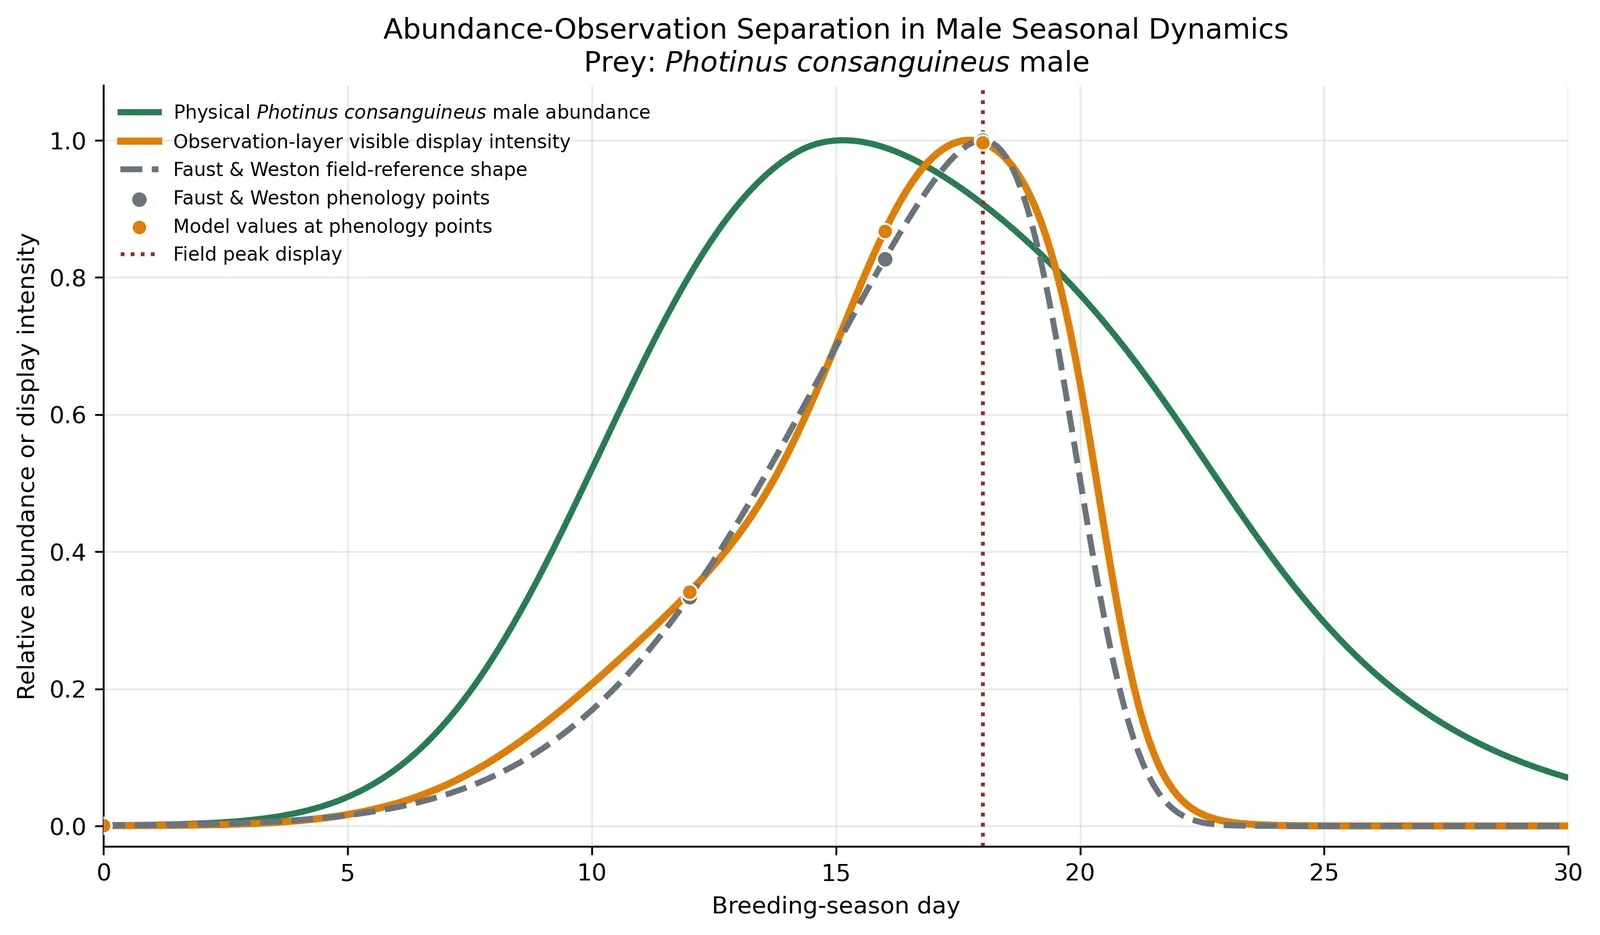
图注:横轴为繁殖季天数,纵轴为各曲线按自身峰值归一化后的相对值,用于比较趋势。绿线是模型中的雄性数量,橙线是可见展示强度,灰色虚线是野外参考曲线;灰色与橙色圆点分别表示野外参考节点和对应日期的模型值。红色竖虚线标出野外最高展示所在的第 18 天。
V · 尾声
做这个项目最大的感悟在于,探索未知往往始于一个特别的、打破你之前认知的例子,就比如萤火虫使用交流进行欺骗,捕食。从整体现象出发,最初可以建立一个简单的个体模型,在一步步尝试贴合自然真实观测数据的过程中,我们需要不断地修正和补充。其中会发现很多大自然的小细节,都是有背后逻辑支撑的。往往已有的理论能解释很多,但总会有一些没有被解释的现实。发现一些解释不了的因素时,可以从本质入手,寻找一些跨领域跨学科,但本质相似的现象借鉴新的灵感。说不定你就能为一个未知的现象或规律,提出新的解释。
参考文献
-
Lloyd, J. E. (1965). Aggressive mimicry in Photuris: Firefly femmes fatales. Science, 149(3684), 653–654.
-
Lloyd, J. E. (1966). Studies on the flash communication system in Photinus fireflies. Miscellaneous Publications, Museum of Zoology, University of Michigan, No. 130.
-
Faust, L. F., & Weston, P. A. (2009). Degree-day prediction of adult emergence of Photinus carolinus (Coleoptera: Lampyridae). Environmental Entomology, 38(5), 1505–1512.
-
Hodgkin, A. L., & Huxley, A. F. (1952). A quantitative description of membrane current and its application to conduction and excitation in nerve. The Journal of Physiology, 117(4), 500–544.
-
Beck, P. S. A., Atzberger, C., Høgda, K. A., Johansen, B., & Skidmore, A. K. (2006). Improved monitoring of vegetation dynamics at very high latitudes: A new method using MODIS NDVI. Remote Sensing of Environment, 100(3), 321–334.